단일 및 단계적 저온 열처리에 따른 Clostridium sporogenes Spores의 저감 효과
Abstract
This study investigated the effects of low-heat treatments on the reduction of Clostridium sporogenes spores in suspension at 85°C and 90°C. At 85°C, the initial population (5.16 log CFU/mL) showed limited reduction (0.17–0.39 log CFU/mL) within 1 min, with reductions exceeding 1 log CFU/mL after 3 min and reaching 4.83 log CFU/mL after 15 min without complete inactivation. In contrast, treatment at 90°C resulted in greater inactivation, achieving complete spore inactivation after 15 min. Thermal inactivation data obtained at both temperatures were analyzed using a first-order kinetics model. The resulting D-values were 2.99 min at 85°C and 2.06 min at 90°C, with correlation coefficients (R²) of 0.99 for both conditions, indicating a high degree of model fitness and reliable description of the spore inactivation behavior. In addition, based on the FDA-recommended thermal processing conditions for pathogen control, stepwise low-heat treatments (67°C for 5 min, 72°C for 1 min, and 75°C for 1 min) were applied to C. sporogenes. The initial spore population was 5.24 log CFU/mL, and reductions of 0.26, 1.46, and 3.06 log CFU/mL were achieved after sequential application of the respective heating steps. These findings confirm the high thermal resistance of C. sporogenes spores and demonstrate that both prolonged single-temperature and stepwise heating effectively enhance spore reduction.
Keywords:
Clostridium sporogenes, Stepwise heat treatment, Low-temperature thermal processing, D-valueI. 서 론
Clostridium sporogenes는 식품 부패와 관련하여 환경 전반에 널리 분포하는 포자형성 혐기성 세균이다. 이 균은 불리한 환경 조건에서도 생존이 가능하며, 식품의 가공 및 저장 과정에서 미생물학적 위해 요인으로 작용할 수 있다. 또한 독소를 생성하지 않으면서도 Clostridium botulinum과 유사한 생리적·형태학적 특성을 나타낸다(Koukou et al., 2022). 이러한 특성으로 인해 C. sporogenes는 보툴리눔균의 대리균(surrogate)으로서 식품 열처리 공정의 유효성을 평가하는 데 활용되어 왔다.
한편, 식중독은 병원성 세균 자체에 의해서만 발생하는 것이 아니라, 이들이 생성하는 독소에 의해서도 유발될 수 있다. 특히 식품 중 C. botulinum이 생성하는 보툴리눔 신경독소의 존재는 식품 안전 측면에서 중요한 문제로 인식되고 있다(Ścieżyńska et al., 2012). Clostridium 속 세균은 다양한 식품군에서 특징적으로 관찰되며, 육류, 가금류, 어류 및 해산물뿐만 아니라 후추, 오레가노, 계피와 같은 향신료에서도 검출되는 것으로 알려져 있다. 이러한 식품을 대상으로 한 밀봉 포장은 혐기성 환경을 조성함으로써 C. sporogenes를 포함한 Clostridium 속 미생물의 증식 위험을 증가시킬 수 있다(Kręgiel et al., 2018; Pinto et al., 2024).
식품의 가공기술 가운데 열처리 공정은 저온살균, 고온살균, 초고온살균 등 처리 온도에 따라 구분되고 있으며, 식품의 저장성, 편의성 및 수송성 등의 품질을 향상시키기 위해 널리 활용되고 있다. 열처리의 주된 목적은 식중독 미생물을 불활성화시키는 것으로, 식품공정에서 가장 일반적으로 적용되는 제어 방법 중 하나이다(Xu et al., 2019). 식품의 안전성과 저장성을 확보하기 위해 열처리 공정은 일반적으로 D값과 z값으로 표현되는 살균 동역학적 지표에 근거하여 설정된다. 가장 널리 적용되는 공정은 이른바 ‘보툴리눔 쿡(botulinum cook)’으로 알려진 12-D 열처리 공정으로, 이는 공중보건적 안전성 요구를 충족시키는 데 효과적이다(Awuah et al., 2007; Fardella et al., 2021). 그러나 이러한 공정은 비타민을 포함한 영양 성분의 손실뿐만 아니라 색상, 향미 및 조직감 변화 등 관능적 품질 저하를 초래할 수 있다. 아울러 특정 식품을 제외하고는 열처리 조건에서의 온도와 시간에 대한 구체적인 기준이 명확히 제시되지 않은 경우가 많다.
불충분한 열처리는 식중독 미생물을 완전히 불활성화시키지 못할 뿐만 아니라, 미생물이 열 스트레스에 적응하도록 유도할 가능성이 있다(Chen, 2017). 이러한 약한 스트레스에 노출된 미생물은 이후 다른 스트레스 조건들에 노출되었을 때 교차저항(cross-resistance)을 나타내는 특성을 보이기도 한다(Beales, 2004). 최근에는 편의성과 함께 보다 고품질이며 영양적으로 우수한 식품에 대한 소비자 요구가 증가함에 따라 최소가공 식품(minimally processed foods)이 새로운 식품군으로 부각되고 있다. Avila-Gaxiola et al.(2016)은 통조림 파파야 퓌레를 대상으로 비타민 C 함량, 점도 및 색도를 품질 지표로 설정하여 단일 열처리 조건이 아닌 가변 온도 조건(75℃/19.0분, 80℃/8.5분, 90℃/10.7분, 96℃/20.8분)을 적용함으로써 여러 온도 단계의 조합에 따른 적정 가공 조건을 도출하였다. 이러한 가변 온도 열처리는 식품 표면과 내부 간의 온도 편차를 감소시키는 데 기여할 수 있는 것으로 보고되었으며, 충분한 저장성을 확보하는 동시에 장시간 고온 처리로 인한 식품 품질 저하를 완화할 수 있는 것으로 나타났다(Simpson et al., 2020). 이러한 단계적 열처리 방법은 적절한 조건이 적용될 경우 미생물 저감 측면에서의 적용 가능성을 함께 검토할 필요가 있다.
따라서 본 연구에서는 이와 관련한 기초연구로서, 85℃ 및 90℃에서 각각 30초, 1분, 3분, 5분, 10분 및 15분 동안의 단일 열처리와 67℃/5분, 67℃/5분 + 72℃/1분, 67℃/5분 + 72℃/1분 + 75℃/1분의 단계적 열처리 조건에 따른 현탁액 상태의 Clostridium sporogenes 저감 효과를 조사하였다. 아울러 수학적 모델링을 활용하여 본 열처리 조건에서 해당 식중독균의 불활성화를 나타내는 사멸 지표(D-value)를 분석하였다.
Ⅱ. 연구 방법
1. 살균 대상 미생물 및 시료준비
본 연구에서는 C. sporogenes KCTC 5654를 사용하였다. 균주는 Reinforced Clostridial Medium(RCM; BD/Difco Laboratories, Detroit, MI, USA)에 30%(v/v) glycerol을 첨가하여 균주 stock을 제조한 후, −80℃에서 보관하였다. 실험에 사용하기 위해 보존된 균주는 RCM 10 mL에 접종하여 37℃에서 24시간 동안 CO2 인큐베이터를 이용한 혐기 조건에서 증균 배양하였으며, 동일한 조건에서 2회 계대 배양을 수행하였다. 배양이 완료된 균주는 원심분리(5,400 rpm, 10분)를 통해 세포를 회수하였고, 상등액을 제거한 후 pellet을 멸균 펩톤수에 재현탁하였다. 최종적으로 조제된 C. sporogenes 현탁액의 균수는 약 10⁶ CFU/mL로 측정되었다.
2. 저온 열처리
C. sporogenes의 현탁액은 85℃와 90℃에서 각각 30초, 1분, 3분, 5분, 7분, 10분 및 15분 동안 단일 노출되었다. 또한 순차적 열처리는 미국 식품의약국(FDA, 2007)에서 제시한 온도와 시간을 기준으로 수행하였으며, 67℃/5분, 67℃/5분 + 72℃/1분, 67℃/5분 + 72℃/1분 + 75℃/1분의 순서로 수행하였다. 노출 시간은 내부 온도가 목표 온도에 도달했을 때부터 시작되었으며, 온도 측정 시간은 각각 67℃, 72℃, 75℃, 85℃, 90℃에서 2.4분, 2.9분, 3.1분, 5.5분, 6.2분으로 기록되었다. 각각의 열처리된 현탁액은 즉시 얼음물에서 10분 동안 냉각되었다.
3. 미생물 계수
C. sporogenes의 계수를 위해 각 열처리 조건 후 얻어진 현탁액은 0.85%(w/v) 멸균 생리식염수를 이용하여 10배 단계 희석하였다. 희석된 시료 1 mL를 멸균 페트리디시에 분주한 후, Tryptic Soy Agar(TSA; Difco, Detroit, MI, USA)를 주입하여 혼합하였다. 배지는 응고 후 CO₂ 인큐베이터에서 30℃로 설정하여 24–48시간 동안 배양하였다. 배양 후 배지 표면에 형성된 colony를 계수하였으며, 미생물 수는 log CFU/mL로 환산하여 나타내었다.
4. 미생물의 D-value
열처리에 의한 C. sporogenes의 저감화 효과를 정량적으로 평가하기 위해 first-order kinetics model을 적용하여 D-value를 산출하였다. D-value는 일정한 열처리 조건에서 C. sporogenes의 균수가 90%(1 log) 감소하는 데 필요한 시간(min)으로 정의된다. D-value의 계산식(1)과 각 변수의 의미는 다음과 같다.
| (1) |
- ∙ N₀: 열처리 이전 C. sporogenes의 초기 균수 (CFU/mL)
- ∙ N: 열처리 후 C. sporogenes의 잔존 균수 (CFU/mL)
- ∙ t: 열처리 시간 (min)
- ∙ k: 열처리에 따른 사멸 속도 상수 (min⁻¹)
따라서 D-value는 사멸 속도 상수(k)로부터 산출될 수 있으며, 여기서 k는 단위 시간당 미생물 감소 속도를 나타내는 지표로, 열처리에 의해 C. sporogenes가 감소하는 정도를 정량적으로 설명하는 데 활용된다.
5. 통계분석
모든 분석은 3회 반복으로 수행되었으며, 관찰된 실험 결과는 SPSS 25 (IBM SPSS Statistics, SPSS Inc., Chicago, IL, USA) 프로그램을 이용하여 분석하였다. 각 실험군 간의 차이가 통계적으로 유의미한 경우(P<0.05), 3회 반복 실험의 평균값은 다중위검정법(Duncan multiple-range test)을 통해 분석하였다. 온도와 처리시간에 따른 미생물 감소 효과를 비교하기 위해 two-way ANOVA를 수행하였다. 두 집단 간 비교가 필요한 경우에는 독립표본 t-test를 적용하였다. 회귀분석이 수행된 항목에 대해서는 결정계수(R2)를 통해 모형 적합도를 평가하였다.
Ⅲ. 연구 결과
1. 85℃ 및 90℃ 저온 열처리에 따른 C. sporogenes의 살균효과 및 D-value
85℃ 및 90℃의 온도에서 다양한 처리 시간으로 열처리를 수행하여 C. sporogenes의 저감 효과를 <Table 1>에 제시하였다. 85℃의 경우 초기 농도는 5.16 log CFU/mL였으며, 0.5분 및 1분 처리 시 각각 0.17 log 및 0.39 log CFU/mL로 미미한 감소를 나타냈다. 3분 이상 열처리 시에는 1 log 이상 저감화되는 경향을 보였으며, 5분, 7분, 10분 및 15분 처리에서 각각 1.94, 2.65, 3.72 및 4.83 log CFU/mL 감소가 관찰되었다. 이러한 결과는 처리 온도와 시간의 증가에 따라 유의적인 감소를 나타내었다(P<0.05). 그러나 15분 처리 이후에도 해당 조건에서는 완전한 불활성화에는 도달하지 못하였다. 온도와 처리시간에 따른 log reduction 값을 대상으로 two-way ANOVA를 수행한 결과, 온도와 시간 모두에서 유의적인 차이가 나타났으며(P<0.05), 동일 처리시간에서 90℃ 조건이 85℃보다 더 큰 감소를 보였다. 처리 시간 증가에 따라 0.5분, 1분, 3분, 5분, 7분, 10분에서 각각 0.44, 0.74, 1.65, 2.71, 3.80, 4.83 log CFU/mL로 감소하였으며, 15분 처리 시에는 모두 불활성화 되었다(5.04 log CFU/mL). Wachnicka et al.(2016)의 보고에 의하면 C. botulinum 포자는 균주 및 회수 조건에 따라 열 저항성이 크게 달라질 수 있으나, 일반적으로 90℃에서 10분간의 가열은 포자 수를 약 6-log 수준으로 감소시키는 것으로 보고되었다. 이와 유사하게, Wang et al.(2012)은 C. perfringens 포자를 90℃ 및 100℃의 물에서 10–30 분간 처리하였을 때 90% 이상의 포자가 불활성화된다고 보고하였다. 또한 Champidou et al.(2024)의 연구에 따르면 인산완충용액에서 C. botulinum 포자를 80℃로 처리했을 때 D80 값은 0.7–0.8분으로 나타났으며, 실제 식품 매트릭스에서도 78–85℃ 범위의 열처리를 통해 포자 불활성화가 가능함을 제시하였다.

Effect of low-heat treatment (85℃ and 90℃) on the reduction of Clostridium sporogenes in the suspension
Clostridium 속 균주는 같은 종(species)일지라 도 유전적 특성 및 포자 형성 조건에 따라 가열 처리 후 비활성화 동역학에 차이를 보일 수 있다. Lin et al.(2022)의 연구에서는 현탁액 조건에서 C. perfringens 포자를 80℃와 90℃에서 30분간 처리했을 때 각각 약 0.52 및 1.80 log CFU/mL의 감소가 관찰되었으며, 이는 본 연구결과보다 상대적으로 낮은 저감화 수준에 해당한다. 이러한 미생물의 열에 의한 사멸 정도 차이는 미생물의 생육 온도, 손상된 포자 회수율및 배양에 따른 열 저항성 차이에 기인한 것으로 해석된다.
한편, 동일한 온도 범위에서 수행된 Jeon and Park(2024)의 연구에서는 Listeria monocytogenes를 대상으로 열처리를 수행한 결과, 각각 85℃/15분 및 90℃/7분 처리 시 완전한 불활성화가 달성되었다고 보고하였다. Park et al.(2022)의 연구에서는 배 퓌레를 대상으로 70℃와 90℃에서 각각 15분 간 열수 처리를 했을 때, 일반세균수와 대장균이 모두 검출 한계 이하로 감소함을 확인하였다. 이는 비포자형성균을 대상으로 한 선행연구로 완전한 불활성화 결과는 배양 가능한 영양세포의 소실을 의미하는 것으로 해석될 수 있으며, 포자형성균의 경우 동일한 열처리 조건에서도 영양세포는 사멸되었을 수 있으나 내생 포자는 잔존했을 가능성을 배제할 수 없다. 비포자형성균과 포자형성균은 열에 반응하는 생리적 상태가 근본적으로 다르기 때문이다. 비포자형성균은 대사 활성 상태로 열에 의해 세포막 및 단백질이 빠르게 손상되는 반면, 내생 포자는 다층 구조의 코어(core), 펩티도글리칸으로 구성된 코텍스(cortex) 및 단백질성 포자외피로 이루어져 있으며, 특히 코어의 낮은 수분 함량과 DNA 보호 단백질의 존재로 인해 동일한 열처리 조건에서도 상대적으로 높은 내열성을 나타낸다(Setlow, 2014). 이러한 특성은 Clostridium속 포자가 일반적으로 높은 내열성을 갖는다는 기존 보고와도 일치한다. 이에 열처리 기준을 설정하기 위해서는 배지 또는 현탁액 조건에서 도출된 포자 불활성화 결과 보다 실제 식품 매트릭스, 식품의 조성, 수분함량 및 또는 생산 환경 조건을 고려하여 다양한 열처리를 수행함으로써 포자 저감 효과를 정량적으로 평가할 필요가 있다.
식품과학 및 공학 분야에서는 세균 및 포자의 불활성화를 정량적으로 평가하기 위해 일차 반응 속도(first-order kinetics) 모델이 일반적으로사용된다(Simpson et al., 2016). 본 연구에서는 85℃ 및 90℃ 조건에서 각각 0.5, 1, 3, 5, 7, 10, 15분 동안 C. sporogenes를 열처리한 후, 그 결과를 first-order kinetics model을 이용하여 분석하였다(<Table 2>). 또한 열처리에 따른 미생물의 불활성화는 일반적으로 처리 시간이 증가함에 따라 지수 함수적 감소 특성을 나타낸다. 이러한 특성으로 인해 생존 미생물 수를 반대수 좌표(semi-logarithmic scale)에 도시할 경우, colony forming unit(CFU)의 변화는 선형 관계로 표현될 수 있다([Fig. 1], [Fig. 2]). 이때 해당 직선의 기울기를 이용하여 초기 미생물 수 대비 90% 감소에 소요되는 시간인 D-value를 산출할 수 있다(Butscher, 2016; Choi et al., 2017). 1에 근접한 상관계수(R2)는 모델 적용에 따른 D-value값이 사멸패턴의 정확성을 보여주는데 본 연구에서 85℃와 90℃ 조건 모두에서 R2값은 0.99로 나타나, 모델의 적합도가 매우 높은 것으로 확인되었다. 이에 따라 도출된 D-value는 85℃에서 2.99분, 90℃에서 2.06분으로, 처리 온도가 증가함에 따라 D-value가 감소하는 경향을 보였다. Redondo-Solano et al.(2016)은 Clostridium difficile 포자를 대상으로 한 연구에서 D-value가 85℃에서 4.93–5.95분, 90℃에서 1.16–1.76분 범위로 보고된 바 있다. 본 연구 결과는 90℃ 조건에서는 유사한 수준을 보였으며, 85℃에서는 상대적으로 더 낮은 값을 나타냈다. 앞선 연구는 펩톤수 및 식품 내 조건에서 수행된 반면 본 연구는 현탁액 상태에서 진행되었기 때문에, 식품의 조성 차이에 따라 D-value에는 일부 차이가 나타날 수 있는 것으로 판단된다. 이러한 결과는 C. sporogenes의 생존률이 열처리 시간에 따라 선형적으로 감소함을 나타내며, 다양한 온도 조건에서의 미생물 저감화 효율성을 이해하는 데 중요한 정보를 제공한다.
D-values of Clostridium sporogenes estimated using a first-order kinetics model at 85℃ and 90℃
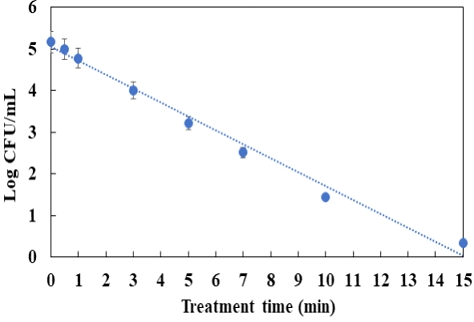
Effects of Low-Heat Treatment (85℃) on Clostridium sporogenes and Fitted Survival Curves from the First-Order Kinetics Model.
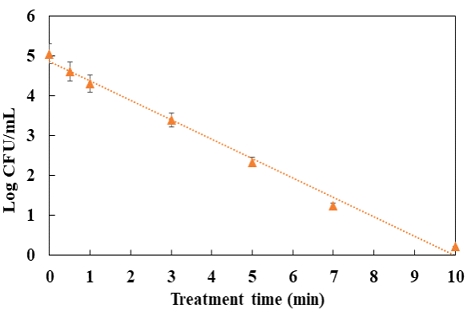
Effects of Low-Heat Treatment (90℃) on Clostridium sporogenes and Fitted Survival Curves from the First-Order Kinetics Model.
2. 순차적 열처리에 따른 C. sporogenes의 살균효과
미국 식품의약국(FDA)의 Fish and Fishery Products Hazards and Controls Guidance에서는 수산물 및 수산물 가공품에서 병원성 미생물의 성장과 독소 형성을 제어하기 위한 시간–온도 지침을 제시하고 있으며, L. monocytogenes의 경우 6-log 저감화를 달성하기 위한 열처리 조건으로 67℃에서 5분, 72℃에서 1분, 그리고 75℃에서 40초의 처리를 제안하고 있다(U.S. FDA, 2007). 다만, L. monocytogenes는 비포자성 세균으로, 포자를 형성하는 Clostridium속 미생물과는 내열 특성에서 차이를 보인다. 이에 본 연구에서는 FDA에서 제시한 병원성 미생물 제어를 위한 열처리 기준을 참고하되, 기존에 제안된 75℃에서 40초 처리 조건을 75℃에서 1분으로 조정하였다. 이러한 조건 하에서 C. sporogenes를 대상으로 수행한 열처리 저감화 효과를 [Fig. 3]에 제시하였다. 초기 C. sporogenes의 균수는 5.24 log CFU/mL로 측정되었다. 67℃/5분간 열처리한 결과, 균수는 4.98 log CFU/mL로 감소하여 0.26 log CFU/mL의 저감 효과가 나타났다. 이후 67℃/5분 처리 후 72℃/1분간 추가 열처리를 적용하였을 때, 균수는 3.78 log CFU/mL로 감소하여 총 1.46 log CFU/mL의 저감이 확인되었다. 또한 67℃/5분, 72℃/1분 처리에 이어 75℃/1분간 추가 처리한 경우에는 균수가 2.18 log CFU/mL로 감소하였으며, 이는 초기 균수 대비 3.06 log CFU/mL의 저감화 되었다.
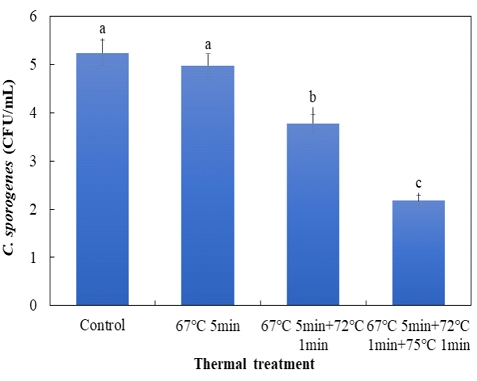
Effect of sequential low-heat treatment (67°C for 5 min, 72°C for 1 min, 75°C for 1 min) on the reduction of Clostridium sporogenes in the suspension.
Jeon and Park(2024)은 L. monocytogenes를 대상으로 동일한 단계적 열처리를 적용한 결과 최종적으로 약 6 log CFU/mL 수준의 감소를 보고한 바 있다. 이에 비해 본 연구에서 사용한 C. sporogenes는 동일한 조건에서도 상대적으로 낮은 저감 수준을 보여, 포자 형성균이 비포자성 세균에 비해 높은 내열성과 열 저항성을 갖는다는 기존 보고와 유사한 경향을 나타냈다. 따라서 FDA에서 제시한 열처리 조건만으로는 완전한 불활성화에 한계가 있을 수 있음을 시사한다. 다만, 단계적으로 적용된 가열 처리에서도 미생물 감소가 지속적으로 나타났으며, 처리 단계가 증가함에 따라 생존율이 점진적으로 감소하는 경향을 보였다. 서론에서 언급한 바와 같이, 불충분한 열처리는 미생물의 열 스트레스 적응 및 교차저항을 유도할 가능성이 있으나, 본 연구의 단계적 가열 조건에서는 저온 처리 후 비교적 짧은 시간 간격으로 온도를 순차적으로 상승시킴으로써 세포 손상이 축적되는 동안 충분한 회복 및 적응이 이루어지기 전에 추가적인 열 스트레스가 가해졌을 가능성이 있다. 이러한 누적 손상은 세포막과 단백질 구조의 점진적인 변성을 유도하여 결과적으로 생존율 감소에 기여한 것으로 판단된다. Li et al.(2020)의 연구에 의하면 우유에 존재하는 호열성 미생물을 대상으로 80/85℃, 85/90℃, 80/90℃와 같은 유사한 온도에서 순차적 열처리를 적용 한 경우보다 상대적으로 낮은 온도(73.5/125℃)에서 높은 온도로 순차적 열처리했을 때 검출 미만 한계(1 log CFU/mL) 이하로 나타났다. 이는 단계적 가열이 미생물의 열 적응을 유도하기보다 세포 손상을 누적시키는 방식으로 작용할 수 있음을 뒷받침한다. 따라서 본 연구 결과는 최소가공 수산가공식품에서 포자 형성균 제어를 위한 열처리 조건 설정 및 단계적 가열 공정 설계에 기초 자료로 활용될 수 있을 것으로 판단된다.
Ⅳ. 결 론
본 연구는 85℃ 및 90℃ 조건에서 다양한 열처리 시간이 C. sporogenes의 저감화에 미치는 영향을 평가하였다. 결과적으로, 85℃ 조건에서는 처리 시간이 증가함에 따라 균수가 점진적으로 감소하였으나 15분 처리 이후에도 완전한 불활성화에는 도달하지 못하였다. 반면, 90℃ 조건에서는 15분 처리 시 모든 균이 불활성화되었다. first-order kinetics 모델을 적용한 결과, D-value는 85℃ 및 90℃에서 각각 2.99분과 2.06분으로 나타났으며, 두 조건 모두에서 R2값은 0.99로 나타나 모델의 적합성을 확인하였다. 또한 FDA의 지침에 따라 67℃/5분, 67℃/5분 + 72℃/1분, 그리고 67℃/5분 + 72℃/1분 + 75℃/1분의 조건을 C. sporogenes에 적용한 결과, 처리 단계가 추가됨에 따라 균수가 감소하는 경향을 보였으며 최종적으로 3.06 log CFU/mL의 저감화가 확인되었다. 종합적으로 본 연구는 포자 형성균인 C. sporogenes를 대상으로 열처리 온도, 처리 시간 및 단계적 가열 조건이 미생물 저감화에 미치는 영향을 정량적으로 제시하였다. 다만, 본 연구는 현탁액 조건에서 수행되었으므로 실제 식품의 조성 성분에 따라 미생물의 열 저항성과 사멸 효율이 달라질 수 있다. 따라서 향후 연구에서는 수산가공식품(연육 기반 제품 등)과 같은 실제 식품 매트릭스를 고려한 추가 실험을 통해 열처리 공정의 적용 가능성을 검토할 필요가 있다.
References
-
Avila-Gaxiola E, Delgado-Vargas F, Zazueta-Niebla J, Lopez-Angulo G, Vega-Garcia M and Caro-Corrales J(2016). Variable retort temperature profiles for canned papaya puree. J Food Process Engineering, 39(1), 11~18.
[https://doi.org/10.1111/jfpe.12194]

-
Awuah GB, Ramaswamy HS and Economides A(2007). Thermal processing and quality: principles and overview. Chemical Engineering and Processing, 46(6), 584~602.
[https://doi.org/10.1016/j.cep.2006.08.004]
-
Beales N(2004). Adaptation of microorganisms to cold temperatures, weak acid preservatives, low pH, and osmotic stress: A review. Compr Rev Food Sci Food Saf., 3(1), 1~20.
[https://doi.org/10.1111/j.1541-4337.2004.tb00057.x]
- Butscher M(2016). Non-thermal plasma inactivation of microorganisms on granular food products. PhD Dissertation, ETH Zurich, Zurich, Switzerland.
-
Champidou C, Ellouze M, Haddad N and Membre JM(2024). Modeling inactivation of non-proteolytic Clostridium botulinum type B spores in a plant-based fish alternative. Front Microbiol., 15, 1509681.
[https://doi.org/10.3389/fmicb.2024.1509681]
- Chen Z(2017). Stress responses of foodborne pathogens and implications in food safety. J Food Microbiol Saf Hyg., 2, E103.
-
Choi S, Puligundla P, and Mok C(2017). Effect of corona discharge plasma on microbial decontamination of dried squid shreds including physico-chemical and sensory evaluation. LWT., 75, 323~328.
[https://doi.org/10.1016/j.lwt.2016.08.063]
-
Fardella M, Ramirez C, Caballero E, Sanchez E, Pinto M, Nunez H, Valencia P, Almonacid S and Simpson R(2021). Variable retort temperature profiles (VRTPs) and retortable pouches as tools to minimize furan formation in thermally processed food. Foods., 10(9), 2205.
[https://doi.org/10.3390/foods10092205]
- Food and Drug Administration(FDA)(2007). Foodborne Pathogenic Microorganisms and Natural Toxins Handbook: Listeria monocytogenes. Silver Spring, MD, USA.
-
Jeon EB and Park SY(2024). Effects of low-heat treatment on Listeria monocytogenes reduction. JFMSE., 36(6), 1205~1212.
[https://doi.org/10.13000/JFMSE.2024.12.36.6.1205]
-
Koukou I, Stergioti T, la Cour R, Gkogka E and Dalgaard P(2022). Clostridium sporogenes as surrogate for proteolytic C botulinum: development and validation of extensive growth and growth-boundary model. Food Microbiol., 107, 104060.
[https://doi.org/10.1016/j.fm.2022.104060]
- Kregiel D, Piatkiewicz A, Zakowska Z and Kunicka-Styczynska A(2018). Zanieczyszczenia mikrobiologiczne surowcow. In Mikrobiologia Techniczna. Libudzisz Z, Kowal K, and Zakowska Z, Eds. Wydawnictwo Naukowe PWN, Warsaw, Poland, 2, 235~252.
-
Li F, Hunt K, Buggy AK, Murphy KM, Ho QT, O'Callaghan TF, Butler F, Jordan K and Tobin JT(2020). The effects of sequential heat treatment on microbial reduction and spore inactivation during milk processing. Int Dairy J., 104.
[https://doi.org/10.1016/j.idairyj.2020.104648]
-
Lin T, Bian H, Sun S, Wang X, Liu G and Wang D(2022). Inactivation of Clostridium perfringens C1 spores by the combination of mild heat and lactic acid. Foods., 11(23), 3771.
[https://doi.org/10.3390/foods11233771]
-
Park MK, Cho YS and Jang HW(2022). Optimization of hydrothermal treatment conditions for pear puree using the response surface methodology. J Korean Soc Food Sci Nutr., 51(11), 1205~1214.
[https://doi.org/10.3746/jkfn.2022.51.11.1205]
-
Pinto CA, Mousakhani Ganjeh A, Barba FJ and Saraiva JA(2024). Impact of pH and high-pressure pasteurization on the germination and development of Clostridium perfringens spores under hyperbaric storage versus refrigeration. Foods., 13(12), 1832.
[https://doi.org/10.3390/foods13121832]
-
Redondo-Solano M, Burson DE and Thippareddi H(2016). Thermal resistance of Clostridium difficile spores in peptone water and pork meat. J Food Prot., 79(9), 1468~1474.
[https://doi.org/10.4315/0362-028X.JFP-15-579]
- Sciezynska H, Mackiw E, Maka L and Pawlowska K(2012). Nowe zagrozenia mikrobiologiczne w zywnosci. Rocz Panstw Zakl Hig., 63, 397~402.
-
Setlow P(2014). Germination of spores of Bacillus species: what we know and do not know. J Bacteriol., 196(7), 1297~1305.
[https://doi.org/10.1128/JB.01455-13]
-
Simpson R, Jimenez D, Almonacid S, Nunez H, Pinto M and Ramirez C, Vega O, Fuentes L and Angulo A(2020). Assessment and outlook of variable retort temperature profiles for the thermal processing of packaged foods: plant productivity, product quality, and energy consumption. J Food Eng., 275, 109839.
[https://doi.org/10.1016/j.jfoodeng.2019.109839]
- Simpson R, Nunez H and Ramirez C(2016). Principles of thermal processing of packaged foods. In Thermal Processing of Packaged Foods. Springer.
-
Wachnicka E, Stringer SC, Barker GC and Peck MW(2016). Systematic assessment of nonproteolytic Clostridium botulinum spores for heat resistance. Appl Environ Microbiol., 82(19), 6019~6029.
[https://doi.org/10.1128/AEM.01737-16]
-
Wang G, Paredes-Sabja D, Sarker MR, Green C, Setlow P and Li YQ(2012). Effects of wet heat treatment on the germination of individual spores of Clostridium perfringens. J Appl Microbiol., 113(4), 824~836.
[https://doi.org/10.1111/j.1365-2672.2012.05387.x]
-
Xu A, Chuang S, Scullen OJ, Huang L, Sheen S, Sheen LY, Johnson JR and Sommers CH(2019). Thermal inactivation of extraintestinal pathogenic Escherichia coli suspended in ground chicken meat. Food Control., 104, 269~277.
[https://doi.org/10.1016/j.foodcont.2019.05.001]