수입 구피(Poecilia reticulata)에서 발생한 입린증 발현 Aeromonas veronii의 병원성 및 항생제 내성 특성 분석
Abstract
This study investigated the pathogenic and antimicrobial resistance characteristics of Aeromonas veronii isolated from imported guppy (Poecilia reticulata) exhibiting dropsy symptoms in a hatchery in Gunsan, Korea. The affected fish showed scale protrusion, hemorrhage, and abnormal swimming behavior, with approximately 80% cumulative mortality. The isolate was identified as A. veronii using 16S rRNA sequencing, species-specific PCR, and gyrB gene analysis. Pathogenicity was evaluated by immersion challenge, resulting in dose-dependent mortality. At 3.2 × 10⁵ CFU/mL, 60% mortality was observed, and the LD₅₀ was estimated to be ≤ 3.2 × 10⁵ CFU/mL. The strain harbored virulence genes including act, aerA, and hlyA. Antimicrobial susceptibility testing based on CLSI (2018) guidelines indicated reduced susceptibility to several antibiotics. Notably, resistance was inferred for Meropenem and Ciprofloxacin based on inhibition zone diameters. The tetracycline resistance gene tet(A) was also detected. These findings suggest that imported ornamental fish may serve as reservoirs of antimicrobial-resistant A. veronii, highlighting the need for continuous surveillance and prudent antimicrobial management in aquaculture.
Keywords:
Aeromonas veronii, Poecilia reticulata, Scale protrusion disease, Tetracycline, Antimicrobial resistanceI. 서 론
최근 관상어는 애완동물의 범주에 포함 되어 수산관상생물 (Aqua-pet)이라는 용어로 사용된다. 관상어 양식은 단순한 취미 활동을 넘어 연간 약 10억 마리 이상의 관상어가 국제적으로 거래되어지고 있으므로 새로운 부가가치를 창출하는 산업으로 평가된다. Aqua-pet 사업은 관상어 거래 뿐만 아니라 양식 환경 설치물 (레이아웃)을 포함한 제반산업이 가파른 성장세를 보일 것으로 추정되어져 소득 및 고용 창출의 고부가가치 산업으로 자리매김할 것으로 전망되고 있다 (Kim and Jung, 2012; Kim, 2015, John and Hatha, 2013; Sreedharan et al., 2013). 미국의 경우 담수 관상어는 가장 인기 있는 반려동물 중 하나로, 2018년 기준 산업 규모는 약 4,500만 달러로 추정된다 (USDA, 2019). 국내 관상어 산업 규모는 2014년 약 4,100억 원에서 2020년 4,873억 원으로 성장하였으며, 2025년까지 6,500억 원 이상으로 확대될 것으로 전망발표 하였다(MOF, 2021). 최근‘제3차 관상어산업 육성 종합계획(`26~`30)’(MOF, 2025)의 발표와 이러한 글로벌 흐름에 발맞춰 관상어 산업의 발전을 국가 전략산업으로 육성하고 있다.
국내 주요 관상어종으로는 금붕어, 비단잉어 및 구피 등이 생산 및 유통되고 있다. 특히, 구피 (Poecilia reticulata)는 남아메리카 원산의 소형 난태생 어류로, 뛰어난 번식력과 다양한 체색 및 지느러미 형태를 지녀 전 세계적으로 가장 널리 사육되는 담수 관상어 중 하나로서 유전육종 기술의 발전에 따른 Albino full red guppy, Dragon guppy 및 German white Guppy 등이 국내에서도 높은 인기종으로서 잠재적인 고부가 품종으로 평가되고 있다, 특히 미국의 경우에는 위와 같은 고부가 품종인 Fancy-guppy가 대표종으로 선호도가 매우 높은종이다 (MOF, 2021; Soto et al., 2024).
그렇지만, 구피가 Aqua-pet으로의 상품가치가 상승됨에 따라 외국(파키스탄, 싱가폴, 말레이시아 및 스리랑카)등으로 부터 수입 의존도가 크게 증가되어 관상어와 함께 사육수에 의해 담수 백점충 (Iqbal et al., 2013), Megalocytivirus (Nolan et al., 2015) 및 Aeromonas spp. (Lazado and Ziberg, 2018)등의 외래병원체들의 유입 가능성이 심각한 문제로 지적되고 있다(Martinezmursia et al., 2008). 정부차원에서도 구피, 엔젤피시 및 비단잉어등의 관상어 질병 안전성 확보 및 양식환경개선을 위해서 각종 질병의 감염으로 인한 피해를 저감시키기 위한 일환으로써 병원체의 원인 규명, 예방, 치료 및 방역에 중요성을 인식하고 있으며, 다각적으로 예찰을 강화하고 있다 (NIFS, 2017).
이에, 본 조사에서는 전북특별자치도 군산시에 소재하고 있는 구피 양식장 에서 발생한 지속적으로 이상유영, 빈사상태 폐사가 지속적으로 발생하는 구피를 대상으로 병원체를 분리 및 동정하여 병원성의 특성 및 약제 감수성 검사를 시행하여 구피를 포함한 관상어 산업의 질병 예방의 효율적인 관리 대책을 수립하고자 한다.
Ⅱ. 연구 방법
1. 시료 채취 및 병성감정
2024년 5월, 전북특별자치도 위치한 한 관상어 양식장에서 종자 생산을 목적으로 구피 (P. reticulata, Albino full red guppy) 친어를 구입하여 사육을 시작하였다. 해당 구피는 수입 이후 축양 과정에서 특별한 증상을 보이지 않았으나, 6월 중순경부터 이상 유영, 체표 출혈 등의 임상 증상이 점차 관찰되기 시작하였고, 7월 초에는 급격한 폐사로 이어졌다. 전체 88마리 중 약 80%에 해당하는 개체가 폐사하였으며, 생존한 15마리도 대부분 빈사 상태를 보였다. 임상적으로는 입린증, 비늘 탈락, 체표 출혈, 이상 유영 등의 전형적인 병어 증상이 확인되었으며([Fig. 1]), 실험실 순치 과정에서는 유리 사각 수조 (22 × 28 × 18 cm)에 수용하고 수온 25℃ 및 용존 산소 수준을 일정하게 유지하면서 매일 20%씩 환수하였다. 병성감정은 국립수산과학원의 「수산생물 병성 감정 지침서」(NIFS, 2018)에 실려있는 세균성 질병 검사법에 따라 수행하였다. 병어의 체표 점액 및 아가미 시료를 슬라이드 글라스에 도말한 후 커버글라스를 덮고, 광학현미경으로 기생충 및 진균 감염 여부를 관찰하였다.
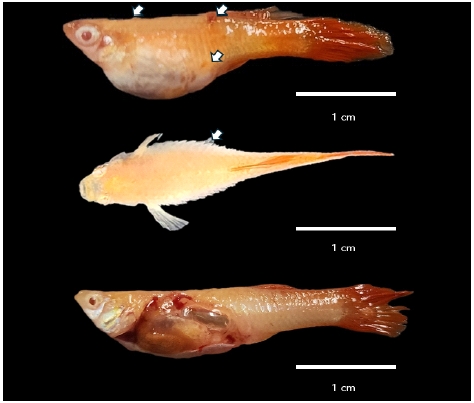
Clinical and pathological features of naturally infected guppy (P. reticulata). External manifestations including scale protrusion and hemorrhagic lesions (white arrows). Internal pathological findings showing liver discoloration and viscous intestinal contents.
2. 원인균 분리 및 유전인자 동정
원인균 분리는 병어의 복부를 절개하여 간과 신장에서 시료를 채취한 후, Tryptic Soy Agar (TSA; DIFCO™, Sparks, USA)평판배지에 획선 도말한 후 27℃에서 24시간 동안 배양하였다. 이때 우점종을 선별 후 계대배양을 3회 반복 시행하여 순수 분리하였다. 분리된 균주는 Tryptic Soy Broth (TSB; DIFCO™, Sparks, USA)에 20% glycerol을 첨가하여 –75℃에서 장기 보존하였고, 필요시 해동하여 실험에 사용하였다.
분리균의 종 동정은 세균 동정에 널리 사용되는 16S rRNA universal primer와 Housekeeping 유전자인 gyrB의 Primer를 이용하여 중합효소연쇄반응(PCR)을 수행하였다(<Table 1>).

PCR primers used in this study
증폭된 PCR 산물은 ABI PRISM 3730XL Analyzer (Applied Biosystems, Foster City, USA)와 BigDye® Terminator v3.1 Cycle Sequencing Kit (Applied Biosystems, USA)를 이용하여 염기서열을 분석하였다. 염기서열을 획득한 후, NCBI의 BLAST 프로그램을 통해 상동성 분석을 실시하였다. 또한, Dorsch et al.(1994)의 방법에 따라 A. veronii specific primer를 이용한 PCR을 추가로 수행하여 균주의 최종 동정을 실시하였다. 이때 양성 대조군으로는 A. veronii (KCCM 90343 및 Jung et al., 2024)에서 분리된 균주를, 음성 대조군으로는 A. hydrophila (SNU HS7; Kim et al., 2022)를 사용하였다. 그 후 분리된 균의 Sequence를 이용하여 MEGA 소프트웨어 사용 후, 계통분류도를 작성 하였다.
3. 분리균의 생물학적 및 생화학적 특성
분리균의 생물학적 특성을 조사하기 위해서 온도 및 염분도에 대한 발육능을 조사 하였다. 즉, 분리된 균주의 생물학적 측정을 위한 접종 균은 TSB 배지에 배양하여 (27 ℃에서 24 h) 3회 원심세정 (2000 rpm, 5 min)하여 OD₆₀₀ = 0.1로 조정하여 사용하였다. 한편, 발육능은 수온 5 ∼ 50 ℃ 범위 (5, 10, 15, 20, 25, 27, 30, 37 및 50 ℃)의 9개의 군으로 구별하여, 27℃에서 24시간 배양한 후 측정하였다. 한편, 염분농도시험은 6개의 군 (5, 10, 20, 30, 40 및 50 ppt)으로 구분하여 TSB 배지에 접종하여 27 ℃ 24 hr 배양 후 흡광도를 측정하였다. 한편 생화학적 특성은 API 20E V5.0 kit(BioMérieux, Marcy-l’Étoile, France)를 사용하여 분석하였으며, 제조사에서 제공한 표준 해석 지침에 따라 판독하였다.
4. 원인균의 병원성 검사
원인균의 병원성 검사를 위해서 외인적 및 내인적 인자를 검사하였다. 외인적 검사로는 Casein 분해능은 Skim milk agar 법 (Vijayaraghavan et al., 2013) 그리고 지질 분해능은 Tween 20 agar 법 (Mohaini et al., 2022)으로 확인하였다. 내인적 검사로는 Virulence gene의 검출은 Nawaz et al.(2010)의 방법을 따라 Enterotoxin 유전자인 act, ast 및 alt 그리고 Haemolysin 유전자인 aerA 및 hlyA를 PCR법으로 수행하였다(<Table 1>).
5. 항생제 감수성 검사
분리된 균주의 항생제 감수성 검사는 Mueller–Hinton Agar (MHA; DIFCO™, Sparks, USA)를 이용한 Kirby–Bauer 디스크 확산법(Disk diffusion method)에 따라 수행하였다 (Bauer et al., 1966). 균 현탁액은 0.5 McFarland standard로 조정한 후 MHA 배지에 균일하게 도말하였으며, 항생제 디스크를 배치한 뒤 35 ℃에서 18시간 배양하였다. 배양 후 형성된 저지대의 직경(mm)을 측정하였다. 시험 방법 및 조건 설정은 CLSI M45 (3rd edition, 2015) 가이드라인을 참고하였다. 다만 CLSI M45에서는 일부 비정형 세균에 대해 디스크 확산법 해석 기준이 제한적으로 제시되며, 특히 Aeromonas spp.의 경우 항생제별 임상적 Breakpoint가 충분히 확립되어 있지 않다. 따라서 본 연구에서는 Inhibition zone 직경을 기반으로 정량적 수치를 제시하였으며, CLSI 기준에 따른 감수성(S), 중간(I), 내성(R)으로의 범주적 판정은 수행하지 않았다.
사용된 항생제는 총 15종으로, Ampicillin (10 ㎍), Piperacillin–tazobactam (110 ㎍), Cefepime (30 ㎍), Cefotaxime (30 ㎍), Cefoxitin (30 ㎍), Cefuroxime sodium (parenteral, 30 ㎍), Imipenem (10 ㎍), Meropenem (10 ㎍), Amikacin (30 ㎍), Gentamicin (10 ㎍), Tetracycline (30 ㎍), Ciprofloxacin (5 ㎍), Levofloxacin (5 ㎍), Trimethoprim–sulfamethoxazole (25 ㎍) 및 Chloramphenicol (30 ㎍)이며, 모든 항생제 디스크는 Oxoid (Hampshire, UK) 제품을 사용하였다.
6. Tetracyline의 내성 유전자 검색
한편, 분리균의 Tetracycline 내성 유전자 보유 여부는 PCR법으로 확인하였다. 내성 유전자 검출에는 담수어에서 검출 빈도가 높은 것으로 보고된 Primer 3쌍을 사용하였으며, 사용된 Primer의 염기서열은 <Table 1>에 제시하였다.
7. 어체감염성 실험
병원성 검증 실험에는 병어에서 본 증이 발병한 이력이 없는 경기도 지역의 관상어 도매점에서 확보한 건강한 구피 (P. reticulata, 평균 체장 3.5 ± 0.8 cm, n = 100)를 사용하였다. 어체는 25 × 17 × 22 cm 크기의 사각 수조 (수량 5 L)에 수조당 20마리씩, 총 5개 수조에 분리하여 사육하였다. 실험 기간 동안 수온은 27 ± 1 ℃, 용존 산소는 5 ± 1 ppm으로 유지하였다. 감염 시험은 침지법(Immersion method)을 이용하여 수행하였다.
실험에 사용된 A. veronii는 TSB 배지에서 27℃, 24시간 동안 배양한 후, Phosphate-buffered saline (PBS, pH 7.2)로 3회 원심세정 (6,000 rpm, 5 min)하여 세척하고 최종적으로 균 현탁액을 제조하였다. 실험군은 접종균 농도에 따라 3.2 × 10⁵, 3.2 × 10⁶, 3.2 × 10⁷ 및 3.2 × 10⁸ CFU/mL의 4개 처리군으로 설정하였고, 대조군은 PBS만을 처리하여 총 5개 군으로 구성하였다.
감염 실험 중 폐사한 개체는 즉시 수거하여 간, 비장 및 신장을 무균적으로 적출한 후, Ampicillin (10 mg/L)이 첨가된 TSA 배지에 도말·배양하였다. 이후 재분리된 균주는 A. veronii - specific primer를 이용한 PCR을 통해 접종균과 동일한 균주임을 확인하였다.감염 후 14일 동안 누적 폐사율을 관찰하였으며, LD₅₀ 값은 농도별 누적 폐사율을 기준으로 추정하였다.
Ⅲ. 연구 결과
1. 세균의 분리 및 동정
조사 대상 구피의 아가미 및 체표 병변을 「수산생물 병성 감정 지침서」(NIFS, 2018)에 따라 병성감정을 수행한 결과, 기생충 및 진균은 검출되지 않았다. 그러나 체표, 간, 신장 및 비장 조직을 TSA에 도말하여 27 ℃에서 24시간 배양한 결과, 다수의 A. veronii 집락이 형성되었으며, 일부 Pseudomonas sp.와 Chryseobacterium sp. 집락이 관찰되었다. 우점 집락을 단일 콜로니로 분리한 뒤, 3회 계대 배양을 통해 순수 분리를 확보하였다.
Pseudomonas 속 세균은 담수 환경에서 흔히 분리되는 기회 감염성 세균으로, 상처 부위나 면역력이 저하된 개체에서 2차 감염을 일으키는 것으로 알려져 있다(Gomez and Balcázar, 2008). Chryseobacterium 속 역시 수중 환경에 존재하는 조건성 병원균으로, 피부 및 아가미 감염을 유발할 수 있으나 일반적으로 기회 감염성 환경 스트레스가 동반될 때 발병되어진다고 보고되었다 (Bernardet et al., 2006).
한편, 본 연구에서 주로 분리된 A. veronii는 관상어류 및 담수어류에서 운동성 Aeromonas 패혈증 (MAS, Motile Aeromonad Septicemia)의 주요 원인균으로 보고되고 있다(Austin and Austin, 2016). 이 균은 체표 출혈, 복부 팽창, 비늘 돌출, 아가미 빈혈 등 치명적인 임상 증상을 유발하며, 급성 폐사를 초래하는 병원체로 알려져 있다 (Jung et al., 2024). 실제로 본 연구에서 채집된 구피에서도 동일한 임상 증상이 확인되었으며([Fig. 2]), 후속 침지 감염시험 결과에서도 A. veronii 감염군에서만 105 부터 108까지 농도 의존적으로 높은 폐사율(최대 90%)이 관찰되었다([Fig. 9]).
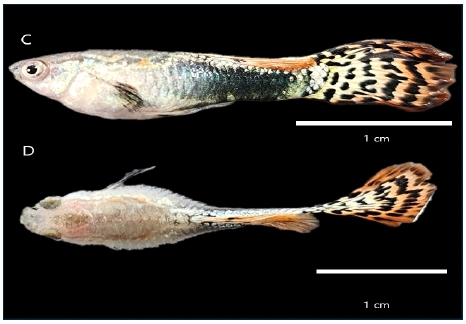
Artificially infection (immersion) of pathogenic symptoms in experimental fish. C,D.
이러한 결과로 미루어 보아, Pseudomonas와 Chryseobacterium은 부수적 요인으로 존재했을 가능성이 높으며, 본 구피 집단의 주요 폐사 원인균은 A. veronii로 판단된다.
2. A. veronii의 생물학적 특성
분리된 A. veronii 균주의 온도별 발육 특성을 평가한 결과, 중온 조건(20, 25, 27 ℃ 및 30 ℃)에서 가장 활발한 증식이 관찰되었으나, 15 ℃및 37℃에서는 낮은 증식을 보였다. 한편, 저온(5, 10 ℃) 및 고온(50 ℃)에서는 성장이 매우 제한적이었다([Fig. 3]). 이러한 결과는 본 균주가 중온성(Mesophilic) 특성을 지니고 있음을 시사한다. 이는 Lazado et al.(2018)의 A. veronii 최적 성장 온도가 중온 범위에 있다는 결과와 본 연구에서 분리된 A. veronii의 발육특성이 일치하였다.
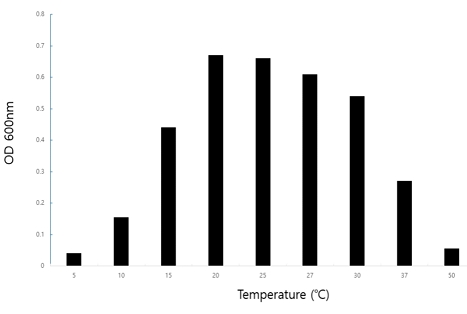
The effects of temperature on growth the present isolates (A. veronii).
한편, 염분 내성 실험 결과는 NaCl 농도 5 ppt 조건에서 증식이 양호하였으나, 10 ppt에서는 현저히 증식능이 감소를 보인 반면에 20 ppt 이상의 고염분 조건(20∼50 ppt)에서는 성장이 전혀 관찰되지 않았다([Fig. 4]). 이는 Aeromonas 속 세균이 세포막의 삼투압 조절능이 제한되어 고농도 염분 조건에서 성장이 억제된다는 보고 (Janda and Abbott, 2010)와 일치하였다. 따라서 본 균주는 담수와 같은 저염분 환경 조건에서 양호한 발육 특성을 보이는 것으로 판단된다.
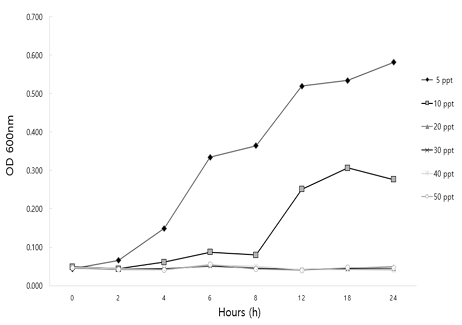
The effects of NaCl concentration on the growth of A. veronii (Isolates) at 27℃. The cell growth was determined in TSB at 27℃ during.
3. 생화학적 특성 분석 결과
운동성 Aeromons 속은 생화학적 특성에서 A. hydrophila, A. caviae 및 A. sobria와 99.0%의 높은 유사성을 나타났다. 그렇지만 Beaz-Hidalgo et al.(2010)는 생화학적 표현형 특성의 다양성으로 인해 명확한 종 동정이 필요로 하였다. 본 조사에서 생화학적 특성 분석 결과(<Table 2>), 본 균주는 β-galactosidase, Arginine dihydrolase, Indole production, Gelatinase, Glucose·Mannitol·Sucrose 발효 및 산화, Cytochrome oxidase, O/129, RM/MR, ESC(HYD.) 시험에서 양성을 나타냈다. 반면, Lysine decarboxylase, Ornithine decarboxylase, Citrate utilization, Tryptophan deaminase, Urease, H₂S 생산, Acetoin 생성, Inositol, Sorbitol, Rhamnose, Melibiose, Amygdalin, Arabinose 발효/산화 시험에서는 음성을 보였다. Janda and Abbot(2010)는 A. veronii의 생화학 반응에서 Ornithine decarboxylase 및 Arginine dihydrolase 양성을 보이는 균주가 biovar sobria의 생화학적 특성에 근접한다고 보고하였다. 본 연구에서 분리된 균주는 표준 균주(ATCC 9071)와 비교를 했을 때, Arginine 과 Indole 생성에서는 양성이었으나, Ornithine 및 Lysine 음성 등의 차이가 확인 되었다. 이러한 차이점 등은 사육 환경, 숙주 종, 또는 균주 간 유전적 다양성에 기인한 생화학적 변이로 해석된다.
The results of Api 20E kit test
4. A. veronii의 동정 인자 검출 및 계통수 분석
본 조사에서는 분리된 균주의 종 동정을 위해 16S rRNA universal primer를 이용한 PCR 및 염기서열 분석을 수행하였다 (Dorsch, 1994). 확보된 염기서열은 GenBank에 등록된 A. veronii (CP015448.1)의 16S rRNA 서열과 100%의 상동성을 보였으며, 상위 100개 검색 결과 또한 모두 A. veronii로 확인되었다. 그러나 16S rRNA 서열은 Aeromonas 속 내에서 종 간 보존성이 높아, 근연 종과의 구분에는 한계가 있었다. 이에 따라 A. veronii - specific primer를 이용한 PCR을 추가로 수행한 결과, 688 bp 크기의 특이 밴드가 확인되어 본 균주가 A. veronii임을 다시 한 번 확인할 수 있었다([Fig. 5]). 종 동정의 정확도를 높이기 위해 보완적 유전자인 gyrB를 타깃으로 PCR 및 염기서열 분석을 수행한 결과, 본 균주의 gyrB 서열은 GenBank에 등록된 A. veronii 균주들과 99.27–100%의 상동성을 보였으며, 차순위 종으로는 A. sobria (98.56%)가 나타났다. 이러한 결과는 16S rRNA 기반 분석만으로는 종 수준의 구분이 제한될 수 있음을 보여주며, 특이 Primer PCR 및 gyrB와 같은 Housekeeping 유전자 기반의 다중 분석이 Aeromonas 속 세균의 정밀한 종 동정에 효과적임을 시사한다(Aravena–Roman et al., 2011; Fernández-Bravo and Figueras, 2020). 한편, 계통수 분석을 위해 Phylogenetic tree를 작성 하였던바, 분리된 A. veronii는 NCBI의 등록된 A. veronii와 같은 Cluster를 형성 한 것을 확인 할 수 있었다([Fig. 6]).
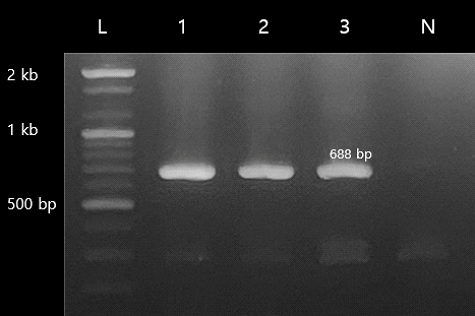
Result of A. veronii Specific primer PCR. L: 100bp DNA marker, 1: A. veronii (KCCM 90343), 2: A. veronii (isolated Jung et al., 2024), 3: A. veronii (Present study), N: A. hydrophila (SNU–HS7)
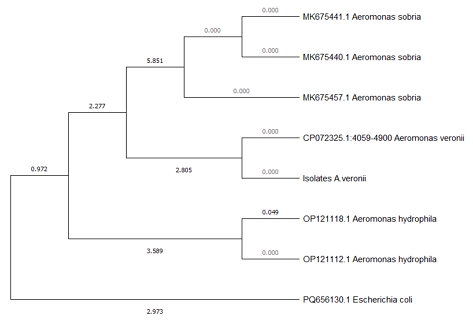
Phylogenetic tree analysis results using the neighbor joining method of isolate A. veonii using the gyrB gene.
5. 병원성 유전자 검출
본 조사에서는 운동성 에로모나스증의 장독성 유전자인 Cytotoxic enterotoxin (act), Cytotonic enterotoxins (alt, ast) 과 병독성 유전자인 Aerolysin (aerA) 및 Haemolysin (hlyA)의 보유 여부를 확인하기 위해 PCR 분석을 실시하였다. 그 결과, 분리된 A. veronii 균주에서는 act, aerA 및 hlyA 등의 병원성 유전자가 검출되었다([Fig. 7]).
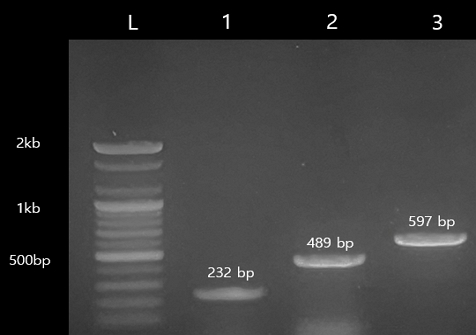
Result of Enterotoxin and Haemolytictoxine gene PCR analysis (L: 100 bp DNA maker, 1: act, 2: aerA, 3: hlyA)
이러한 결과는 Nawaz et al.(2010)이 양식 메기에서 분리한 A. veronii 균주가 동일한 세 가지 병독성 유전자를 보유하며 강독주의 특성을 나타낸다고 보고와 일치한다. 반면, Jung et al.(2024)은 관상용 금붕어 궤양증에서 분리된 A. veronii에서 act 유전자만이 검출되었으며, Kim et al.(2019)은 피부 궤양증을 일으킨 양식 메기 유래 균주에서 aerA와 hlyA 유전자만이 검출된 보고와 다소 차이를 보였다. 이러한 차이는 어종 간의 병인체에 대한 감수성 또는 병변 발현 양상의 차이에서 기인한 것으로 추정된다.
한편, 본 조사에서 면양혈액배지를 상에서 완전용혈을 보이고, 카제인 분해양성을 확인하였다 [Fig. 8]. 이러한 결과들은 Aeromonas 속의 병원성 요인으로 알려진 Gelatinase, Caseinase, 및 Lipase 등은 피부, 근육, 결합조직을 분해하여 궤양과 출혈성 병변을 유발하며, Lipase는 세포막 파괴를 통해 염증 및 조직 괴사를 유도하는 것으로 보고된 바 있다 (Casto et al, 2003; Pemberton et al., 1997). 따라서 본 연구에서 분리된 A. veronii는 병독성 유전자(act, aerA, hlyA)와 함께 단백질 분해효소 (Caseinase, Lipase, Gelatinase) 등 다양한 독성 인자를 보유하고 있어, 구피에서 관찰된 체표 출혈, 점액성 장관 삼출물, 간장의 퇴색 및 빈혈증상 등을 유발시킨 결과들로 미루어 봤을때 병원성이 높은 강독주로 평가될 수 있다.
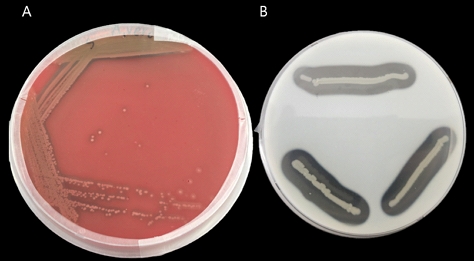
Detection of virulence factors in the isolated A. veronii. A: β-hemolytic activity on sheep blood agar. Clear hemolytic zones indicate β-hemolysis. B: Caseinase activity on casein agar. Transparent halos around the colonies indicate casein hydrolysis.
6. 어체 감염 실험
본 연구에서는 분리된 A. veronii 균주의 병원성을 평가하기 위해 건강한 구피 (P. reticulata)를 대상으로 침지법을 이용한 농도별 감염 시험을 수행하였다. 그 결과, 폐사율은 접종 농도에 따라 증가하는 경향을 보였다([Fig. 9]). 3.2 × 10⁵ CFU/mL 처리군에서는 20마리 중 12마리가 폐사하여 60%의 폐사율을 나타냈으며, 3.2 × 10⁶ CFU/mL 군에서도 동일한 60%의 폐사율이 관찰되었다. 3.2 × 10⁷ CFU/mL 군에서는 14마리(70%), 3.2 × 10⁸ CFU/mL 군에서는 18마리(90%)의 폐사가 발생하였다. 이를 근거로 LD₅₀은 3.2 × 10⁵ CFU/mL 이하 수준으로 추정되었다. 감염된 개체에서는 입린증, 체표 출혈, 복부 팽만 등의 외부 증상과 함께 복강 내 점액 저류, 간의 창백 및 빈혈 등 내부 장기 병변이 동반되었다. 또한 폐사 개체로부터 재분리된 균주는 PCR 및 전기영동 분석을 통해 A. veronii로 확인되었다. Casto et al.(2003)과 Pemberton et al.(1997)은 어체 침습 인자로 알려진 Gelatinase 및 Caseinase가 피부, 근육 및 결합조직을 분해하여 궤양과 출혈성 병변을 유발한다고 보고하였다. 본 조사에서 분리된 A. veronii 균주의 LD₅₀이 10⁵ CFU/mL 수준으로 나타난 것은 해당 균주가 act, aerA, hlyA와 같은 세포독성 유전자뿐 아니라 Gelatinase, Caseinase, Lipase 등의 조직 분해 효소를 함께 보유하고 있기 때문으로 판단된다.
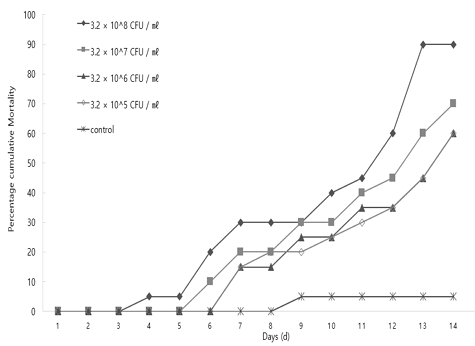
Cumulative mortality of guppy (P. reticulata) exposed to A. veronii using immersion test for 14 days.
구피는 선별적 근친 교배를 통해 화려한 색상 형질이 강화된 품종이다. 그러나 이러한 과정에서 유전적 다양성이 감소하고 면역 유전자 기능이 저하될 가능성이 보고되고 있다 (Smallbone et al., 2016; 2021). 이러한 유전적 제한은 병원체에 대한 저항성 감소를 초래하며, 고밀도 사육 및 수질 악화와 같은 환경적 스트레스와 결합될 경우 생체 방어 기전이 약화되어 폐사율이 더욱 증가할 수 있다 (Kigigha et al., 2012). 특히 Aeromonas 감염의 발병 기전은 어체 점막층에 부착 후 체내로 침투하면서 Aerolysin 계열 독소(act, aerA, hlyA)를 생성하는 것으로 알려져 있으며, 이들 독소는 대식세포에서 염증 유도 사이토카인 및 Eicosanoid 계열 전구물질의 생성을 촉진함으로써 조직 손상과 체액 분비를 유도하는 병리 기전을 가진다(Krovacek et al., 1991; Chopra et al., 2000). 또한 Sreedharan et al.(2012)은 A. veronii가 장독소 유전자(act, alt, ast)뿐 아니라 haemolysin 계열 독소(aerA, hlyA), Type III 및 IV 분비 시스템, Cholesterol acyltransferase 등 다양한 병원성 인자를 보유한다고 보고하였다.
본 연구의 균주에서도 상해성 장독소 act와 용혈성 독소 aerA, hlyA가 함께 확인됨에 따라, 향후 관상어 유래 A. veronii 균주의 병원성 유전자에 대한 추가적인 분자유전학적 특성 분석이 필요할 것으로 사료된다.
7. 항생제 감수성 검사
분리된 A. veronii 균주의 항생제 감수성 시험 결과, 총 15종의 항균제 중 Piperacillin–Tazobactam, Cefepime, Cefoxitin, Cefuroxime sodium, Gentamicin, Trimethoprim–sulfamethoxazole 및 Chloramphenicol에서는 상대적으로 넓은 inhibition zone이 형성되었다. 반면, Cefotaxime, Meropenem, Imipenem, Ciprofloxacin, Levofloxacin, Amikacin 및 Tetracycline에서는 inhibition zone 직경이 상대적으로 작게 나타났다(<Table 3>).
Result of antimicrobial susceptibility test of isolated A. veronii
CLSI VET04-A2 가이드라인에 따르면, 수산 유래 세균에 대한 항생제 감수성 평가는 표준화된 시험 방법을 통해 수행되어야 하며, 최소억제농도(MIC) 기반 해석을 중심으로 임상적 breakpoint 또는 Epidemiological cutoff value (ECV)를 적용하는 것이 권장된다. 그러나 현재까지 Aeromonas spp. 중 A. salmonicida를 제외한 대부분의 종, 특히 A. veronii에 대해서는 임상적 해석 기준이 명확히 확립되어 있지 않다. 따라서 디스크 확산법을 이용한 Inhibition zone 결과를 근거로 감수성(S), 중간(I), 내성(R)을 구분하는 것은 제한적이며, 결과 해석 시 주의가 필요하다.
이에 따라 본 연구에서는 CLSI 기준에 근거하여 각 항생제에 대한 감수성 또는 내성을 단정적으로 판정하지 않고, Inhibition zone 직경을 기반으로 상대적인 항생제 반응 경향을 기술하였다. 이러한 접근은 해석 기준이 부재한 수산 유래 세균에 대해 권장되는 방법으로, 균주의 항생제 반응 특성을 파악하기 위한 기초 자료로 활용될 수 있다.
특히 Meropenem의 Inhibition zone은 6 mm로 매우 제한적으로 나타났으며, 이는 동일 조건에서 다른 항생제에 비해 상대적으로 낮은 항균 반응을 나타낸 것으로 해석된다. Carbapenem 계열 항생제는 인체 의료 분야에서 중요한 치료제로 사용되며, 환경 및 수산 유래 세균에서도 해당 계열에 대한 감수성 변화가 보고되고 있다. 최근 Drk et al.(2023)은 도시 및 병원 폐수에서 분리된 Aeromonas spp.에서 Carbapenem 계열과 Ciprofloxacin에 대한 저항성 특성이 확인되었음을 보고하였다. 본 연구 결과 또한 이러한 경향과 유사하게 일부 항생제에서 Inhibition zone 감소 양상을 보였다.
또한 Fluoroquinolone 계열 항생제인 Ciprofloxacin의 Inhibition zone은 9 mm로 측정되었으며, Levofloxacin에서도 상대적으로 작은 저지대가 관찰되었다. Fluoroquinolone 계열은 DNA gyrase 및 Topoisomerase IV를 표적으로 하는 광범위 항균제로 다양한 세균 감염 치료에 활용되어 왔으나, 최근 양식 환경 및 자연 수계에서 분리된 Aeromonas spp.에서 해당 계열 항생제에 대한 감수성 저하 또는 저지대 감소 경향이 보고되고 있다 (Nawaz et al., 2010; Yang, 2017). 본 연구에서도 유사한 경향이 관찰되었다.
다만 본 연구에서는 CLSI에서 제시하는 표준 균주를 이용한 품질 관리(QC) 시험 및 MIC 기반 정량적 분석이 수행되지 않았으며, 또한 A. veronii에 대한 임상적 Breakpoint가 부재한 점을 고려할 때, 특정 항생제에 대한 내성 여부를 확정적으로 판단하는 데에는 제한이 있다. 따라서 본 결과는 항생제에 대한 절대적인 감수성 평가보다는, 분리균의 상대적인 항생제 반응 특성을 제시하는 기초 자료로 해석하는 것이 타당하다.
이러한 결과는 관상어 산업 및 수산양식 환경에서 다양한 항생제에 대한 반응 특성이 변화하고 있을 가능성을 시사하며, 향후에는 표준화된 MIC 기반 감수성 평가와 더불어 내성 유전자 분석을 포함한 분자생물학적 연구가 병행되어야 할 것으로 판단된다. 또한 지속적인 항생제 감수성 모니터링과 함께, 수산 환경에서의 항생제 사용 관리 및 내성 확산 방지를 위한 체계적인 관리 전략 수립이 필요하다.
8. Tetracycline (Tc) 내성 인자 분석 결과
Tc 내성의 주요 기전은 efflux pump 시스템과 ribosomal protection 단백질 발현으로 구분되며, tet (A) 유전자는 세균 세포 내 Tc 축적을 억제하는 efflux 펌프 단백질의 발현을 유도하는 것으로 알려져 있다 (Lizel et al., 2007; Kim, 2023). 본 조사에서는 분리된 A. veronii 균주로부터 Tetracycline (Tc) 내성 유전자 중 tet (A), tet (E), tet (S)의 존재 여부를 PCR을 통해 확인한 결과, tet (A) 유전자가 검출되었다([Fig. 10]). 그렇지만 그람 양성균에서 검출 되는 것으로 보고된 tet (K), tet (S) 및 tet (W)는 본조사에서 검출 되지 않았다. 추가적으로 그람 양성과 음성 모두 검출되어지는 것으로 알려진 tet (M)인자의 조사가 필요하다고 사료된다. 한편, 본 조사에서 분리된 균주는 수산용 항생제로 널리 사용되는 Tc에 대해 감수성이 전혀 없는 것으로 나타내었으며, 이는 메기와 틸라피아 등의 양식 어류에서 분리된 A. veronii가 Tc 내성을 보이며 아울러 tet (A) 유전자를 보유하였다는 선행 연구와도 일치하며 약재 내성의 심각성을 보여준다 (Kim et al., 2019). 최근 Tc 내성균의 출현은 전 세계적으로 증가하는 추세이며, 이는 농·수·축산업 전반에 걸친 항생제의 과도한 사용 및 오용과 밀접한 관련이 있는 것으로 보고되고 있다 (Roberts, 1996; Lizel et al., 2007). 한편, 전 세계적으로 양식 산업의 급속한 성장과 함께 질병 발생이 증가함에 따라 수산용 항생제의 사용량도 지속적으로 증가하고 있다. 수산용 의약품은 어류 질병의 예방과 치료에 필수적이지만, 약재의 오·남용은 항생제 내성균의 출현을 초래하는 위협 요인이 될 수 있다. 특히, 수입 관상어의 장내 세균에서 Tc 내성률이 30–40%에 이르며, 국내 담수 관상어 유래 세균에서도 70% 이상의 다제내성이 확인되었다는 보고(Yoon et al., 2012)는 관상어 산업 내 항생제 내성균 확산의 심각성을 시사한다. 따라서 항생제 사용을 줄일 수 있는 대안으로 천연 유래 항균물질 개발 등 항생제 대체제에 대한 연구가 필요할 것으로 사료된다.
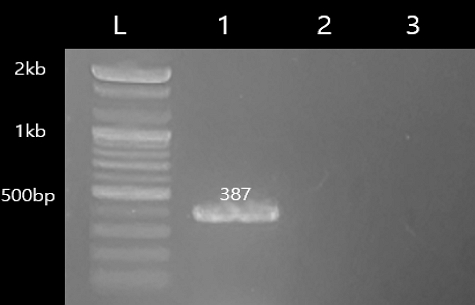
Result of Tetracycline resistance PCR analysis. L: 100bp DNA marker, 1: tet (A), 2: tet (E), 3: tet (S)
Ⅳ. 결 론
본 연구에서는 전북특별자치도 군산시의 관상어 양식장에서 입린증을 보이는 구피 (P. reticulata)로부터 A. veronii를 분리하고, 그 생리적·분자생물학적 특성과 병원성을 종합적으로 분석하였다. 분리된 균주는 20–27℃ 및 5 ppt의 NaCl 조건에서 양호한 생장을 보였으며, 장독소 유전자(act)와 용혈성 독소 유전자(aerA, hlyA)를 모두 보유하고 있었다. 침지법을 이용한 감염 실험 결과, 본 균주는 구피에서 농도 의존적으로 최대 90%의 폐사율을 유발하였고, 임상적으로는 입린증, 체표 출혈, 비늘 돌출 등의 전형적인 Aeromonas 감염 증상이 관찰되었다. 항생제 감수성 시험에서는 Tetracycline을 포함한 일부 항균제에 대해 내성을 나타냈으며, Tetracycline 내성 유전자인 tet (A)의 존재가 확인되었다. 이는 해당 균주가 항생제 남용에 의해 내성을 획득하였을 가능성을 시사하며, 양식 환경에서의 항생제 사용 관리의 중요성을 부각시킨다.
전 세계적으로 관상어 양식 산업의 급속한 성장과 함께 질병 발생이 증가하고 있으며, 이에 따라 수산용 항생제의 사용량도 매년 증가하는 추세이다. 그러나 관상어에 허가된 수산용 항생제의 종류가 제한적이기 때문에 동일 약제의 반복 사용이 불가피하며, 이는 다제내성균의 출현 및 확산의 가능성을 시사 할 수 있다 (NIQS, 2022). 수산용 항생제는 어류 질병의 예방과 치료에 필수적이지만, 오·남용 시 수산식품의 위생학적 안정성에도 위협이 될 수 있다. 따라서 항생제 사용을 줄이기 위한 대안으로 천연 유래 항균 물질 기반의 항생제 대체제 개발이 요구된다. 결론적으로, 본 연구는 구피에서 A. veronii 감염이 병리학적 증상과 높은 폐사율을 유발할 수 있음을 실험적으로 입증하였으며, 관상어 산업 내에서 Aeromonas 감염 발생 시 수산용 항생제의 체계적 관리와 내성 모니터링의 중요성을 강조한다. 향후에는 Aeromonas 속 세균의 병원성 유전자, 항생제 내성 메커니즘에 대한 심층 연구를 통해 관상어 질병의 예방 및 제어를 위한 효과적인 대응 전략 마련에 기여할 수 있을 것으로 기대된다.
Acknowledgments
이 연구는 2026년도 국립 군산대학교 연구년 지원사업에 의해서 연구되었습니다.
References
-
Al Mohaini M, Farid A, Muzammal M, Ghazanfar S, Dadrasnia A, Alsalman AJ, Al Hawaj MA, Alhashem YN and Ismail, S(2022). Enhancing Lipase Production of Bacillus salmalaya Strain 139SI Using Different Carbon Sources and Surfactants. Appl. Microbiol. 2022, 2, 237~247.
[https://doi.org/10.3390/applmicrobiol2010017]

-
Aminov RI, Garrigues-Jeanjean N and Mackie RI(2001). Molecular ecology of tetracycline resistance: Development and validation of primers for detection of tetracycline resistance genes encoding ribosomal protection proteins. Applied and Environmental Microbiology, 67(1), 22~32.
[https://doi.org/10.1128/AEM.67.1.22-32.2001]
-
Aravena-Román M, Inglis TJ, Henderson B, Riley TV and Chang BJ(2012). Antimicrobial susceptibilities of Aeromonas strains isolated from clinical and environmental sources to 26 antimicrobial agents. Antimicrobial agents and chemotherapy, 56(2), 1110~1112.
[https://doi.org/10.1128/AAC.05387-11]
- Austin B and Austin DA(2016). Bacterial Fish Pathogens: Disease of Farmed and Wild Fish. Springer.
-
Bauer AW, Kirby WMM, Sherris JC and Turck M(1966), Antibiotic susceptibility testing by a stand-ardized single disk method. American Journal of Clinical Pathology, 45(4), 493~496.
[https://doi.org/10.1093/ajcp/45.4_ts.493]
-
Beaz-Hidalgo R, Alperi A, Buján N, Romalde JL and Figueras MJ(2010). Comparison of phenotypical and genetic identification of Aeromonas strains isolated from diseased fish. Systematic and applied microbiology, 33(3), 149~153.
[https://doi.org/10.1016/j.syapm.2010.02.002]
-
Bernardet JF, Hugo C, Bruun B(2006). The Genera Chryseobacterium and Elizabethkingia. In: Dworkin, M., Falkow, S., Rosenberg, E., Schleifer, KH., Stackebrandt, E. (eds) The Prokaryotes. Springer, New York, NY.
[https://doi.org/10.1007/0-387-30747-8_25]
-
Castro-Escarpulli G, Figueras M J, Aguilera-Arreolaa, G, Soler L., Fernández-Rendón E, Aparicio GO, Guarro J and Chacón MR(2003). Characterisation of Aeromonas spp. isolated from frozen fish intended for human consumption in Mexico. International Journal of Food Microbiology, 84, 41~49.
[https://doi.org/10.1016/S0168-1605(02)00393-8]
-
Chopra AK, Xu X, Ribardo D, Gonzalez M, Kuhl K, Peterson JW and Houston CW(2000). The cytotoxic enterotoxin of Aeromonas hydrophila induces proinflammatory cytokine production and activates arachidonic acid metabolism in macrophages. Infection and immunity, 68(5), 2808~2818.
[https://doi.org/10.1128/IAI.68.5.2808-2818.2000]
- Clinical Laboratory Standards Institute(2016). Performance standards for antimicrobial disk susceptibility tests; Approved standard-9th ed. CLSI document M45. Wayne, 26(1), 16~18.
-
Dorsch M, Ashbolt NJ, Cox PT and Goodman AE(1994). Rapid identification of Aeromonas species using 16S rDNA targeted oligonucleotide primers: a molecular approach based on screening of environmental isolates. The Journal of applied bacteriology, 77(6), 722~726.
[https://doi.org/10.1111/j.1365-2672.1994.tb02825.x]
-
Drk S, Puljko A, Dželalija M and Udiković-Kolić N(2023). Characterization of Third Generation Cephalosporin- and Carbapenem-Resistant Aeromonas Isolates from Municipal and Hospital Wastewater. Antibiotics (Basel, Switzerland), 12(3), 513.
[https://doi.org/10.3390/antibiotics12030513]
-
Fernández-Bravo A and Figueras MJ(2020). An Update on the Genus Aeromonas: Taxonomy, Epidemiology, and Pathogenicity. Microorganisms, 8(1), 129.
[https://doi.org/10.3390/microorganisms8010129]
-
Geovanny D Gómez, José Luis Balcázar(2008). A review on the interactions between gut microbiota and innate immunity of fish, FEMS Immunology & Medical Microbiology, Volume 52, Issue 2, March, Pages 145~154.
[https://doi.org/10.1111/j.1574-695X.2007.00343.x]
-
Hatha AAM and Nifty J(2013). Distribution, extracellular virulence factors and drug resistance of motile aeromonads in fresh water ornamental fishes and associated carriage water.
[https://doi.org/10.5376/ija.2013.03.0017]
- Iqbal Z and Haroon F(2014). Parasitic Infections of Some Freshwater Ornamental Fishes Imported in Pakistan. Pakistan Journal of Zoology, 46, 651~656.
-
Janda JM and Abbott SL(2010). The genus Aeromonas: Taxonomy, pathogenicity, and infection. Clinical Microbiology Reviews, 23(1), 35~73.
[https://doi.org/10.1128/CMR.00039-09]
-
Jun LJ, Jeong JB, Huh MD, Chung JK, Choi DL, Lee CH and Jeong HD(2004). Detection of tetracycline-re- sistance determinants by multiplex polymerase chain reaction in Edwardsiella tarda isolated from fish farms in Korea. Aquaculture, 240, 89~100.
[https://doi.org/10.1016/j.aquaculture.2004.07.025]
-
Jung HK, Kim MS, Kim SH and Choi MS(2024). A study on the characteristics and pathogenicity of Aeromonas veronii isolated from infected goldfish (Carassius auratus). Journal of Fish Pathology, 37(1), 79~88.
[https://doi.org/10.7847/JFP.2024.37.1.079]
- Kigigha LT, Oku IY and Ojesanmi AS(2012). Enumeration and characterization of bacteria associated with backwater fish species in Wilberforce Island Bayelsa State Nigeria.
-
Kim DY and Kang JH(2012). Improvement of ornamental fish industry through analysis of recognition and market scale. The Journal of Fisheries Business Administration, 43(3), 89~106.
[https://doi.org/10.12939/FBA.2012.43.3.089]
-
Kim DY(2015). Fostering direction of the Ornamental Fish Industry in Korea through a competitive analysis of International Ornamental Fish Industry. The Journal of Fisheries Business Administration. The Korean Society of Fisheries Business Administration, June 30.
[https://doi.org/10.12939/fba.2015.46.1.015]
-
Kim HY, Jun JW, Lim SR, Park SY, Han JE, Park SC and Kim JH(2019). First report of tetracycline-resistant Aeromonas veronii infection in Amur catfish (Silurus asotus) cultured in Korea. Korean Journal of Veterinary Research, 59(4), 207~211.
[https://doi.org/10.14405/kjvr.2019.59.4.207]
-
Kim HY, JUN JW, Lim SR, PARK SY, Jee EH, Park SC and Kim JH(2019). First report of tetracycline-resistant Aeromonas veronii infection in Amur catfish (Silurus asotus) cultured in Korea. Korean J. of Veterinary Research, 59(4), 207~211.
[https://doi.org/10.14405/kjvr.2019.59.4.207]
-
Kim JD, Do JW, Choi HS, Seo JS, Jung SH, Jo HI, Park MA, Lee NS and Park SW(2013). Pathological Changes in Cultured Korean Catfish (Silurus asotus) Artficially Infected with Aeromonas veronii. Environmental Biology Research, 31(4), 486~492.
[https://doi.org/10.11626/kjeb.2013.31.4.486]
-
Kim SW, Kim HJ, Kim SG, Kwon J, Lee SB, Jung WJ, Lee YM, Jo SJ, Sib Sankar Giri, Yoon SH, Kim SH, Kim CM, Cheng Chi and Park SC(2022). Bactericidal efficacy of non-thermal plasma activation against Aeromonas hydrophila and immunological responses of koi (Cyprinus carpio haematopterus), Fish & Shellfish Immunology, Volume 121, 197~204, ISSN 1050-4648.
[https://doi.org/10.1016/j.fsi.2022.01.007]
-
Kim YJ, Jun LJ, Lee YJ, Ko YJ, Oh YE, Wo SJ, ⋯ and Jeong JB(2023). Characterization of Antibiotic Resistance of Aeromonas spp. and Pseudomonas spp. Isolated from Domestic Aquatic Animals. Korean Journal of Fisheries and Aquatic Sciences, 56(4), 388~400.
[https://doi.org/10.5657/KFAS.2023.0388]
-
Krovacek K, Faris A and Månsson I(1991). Growth of and toxin production by Aeromonas hydrophila and Aeromonas sobria at low temperatures. International Journal of Food Microbiology, 13(2), 165~175.
[https://doi.org/10.1016/0168-1605(91)90058-w]
-
Lazado CC, Zilberg D(2018). Pathogenic characteristics of Aeromonas veronii isolated from the liver of a diseased guppy (Poecilia reticulata). Lett Appl Microbiol. Nov., 67(5), 476~483. Epub 2018 Aug 22. PMID: 30040137.
[https://doi.org/10.1111/lam.13057]
-
Liezl Jacobs and Hafizah Y Chenia(2007). Characterization of integrons and tetracycline resistance determinants in Aeromonas spp. isolated from South African aquaculture systems, International Journal of Food Microbiology, Volume 114, Issue March, Pages 295~306, ISSN 0168-1605.
[https://doi.org/10.1016/j.ijfoodmicro.2006.09.030]
-
Martinez-Murcia AJ, Saavedra MJ, Mota VR, Maier T, Stackebrandt E and Cousin S(2008). Aeromonas aquariorum sp. nov., isolated from aquaria of ornamental fish. INTERNATIONAL JOURNAL OF SYSTEMATIC AND EVOLUTIONARY MICROBIOLOGY, 58(5), 1169~1175.
[https://doi.org/10.1099/ijs.0.65352-0]
- MOF(Ministry of Oceans and Fisheries)(2021). The 2nd Comprehensive Plan for Fostering the Ornamental Fish Industry (2021-2025), Retrieved from https://www.mof.go.kr/synap/view.do?fn=MOF_ARTICLE_55563_2024022018dc56de1bd350&fd=202405
- MOF(Ministry of Oceans and Fisheries)(2025). The 3rd Comprehensive Plan for Fostering the Ornamental Fish Industry (2026-2030), Retrieved https://www.mof.go.kr/doc/ko/selectDoc.do?menuSeq=379&bbsSeq=13&docSeq=60271
- National Institute of Fisheries Science (NIFS)(2018). Guideline for Diagnostic Procedures of Aquatic Animal Diseases.
-
Nawaz M, Khan S, Khan A, Sung K, Tran Q, Ker-dahi K and Steele R(2010). Detection and character- ization of virulence genes and integrons in Aeromo- nas veronii isolated from catfish. Food Microbiol- ogy, 27(3), 327~331.
[https://doi.org/10.1016/j.fm.2009.11.007]
- NIQS(National Fisheries Products Quality Management Service)(2022). Fishery Medicine Product Summary Guide, 32. https://www.nfqs.go.kr/apms/eBookList.ad
-
Nolan D, Stephens F, Crockford M, Jones JB and Snow M(2015). Detection and characterization of viruses of the genus Megalocytivirus in ornamental fish imported into an Australian border quarantine premises: an emerging risk to national biosecurity. Journal of fish diseases, 38(2), 187~195.
[https://doi.org/10.1111/jfd.12222]
-
Pemberton JM, Kidd SP and Schmidt R(1997). Secreted enzymes of Aeromonas. FEMS microbiology letters, 152(1), 1~10.
[https://doi.org/10.1111/j.1574-6968.1997.tb10401.x]
-
Roberts MC(1996). Tetracycline resistance determinants: mechanisms of action, regulation of expression, genetic mobility, and distribution. FEMS microbiology reviews, 19(1), 1~24.
[https://doi.org/10.1111/j.1574-6976.1996.tb00251.x]
-
Rosso F Cedano JA, Parra-Lara LG, Sanz AM, Toala A, Velez JF, Hormaza MP, Moncada PA and Correa A(2019). Emerging carbapenem-resistant Aeromonas spp. infections in Cali, Colombia. Brazilian Journal of Infectious Diseases, 23, 336~342.
[https://doi.org/10.1016/j.bjid.2019.08.005]
-
Smallbone W, Ellison A, Poulton S, van Oosterhout C and Cable J(2021). Depletion of MHC supertype during domestication can compromise immunocompetence. Molecular ecology, 30(3), 736~746.
[https://doi.org/10.1111/mec.15763]
-
Smallbone W, Van Oosterhout C and Cable J(2016). The effects of inbreeding on disease susceptibility: Gyrodactylus turnbulli infection of guppies, Poecilia reticulata. Experimental Parasitology, 167, 32~37.
[https://doi.org/10.1016/j.exppara.2016.04.018]
-
Soler L, Yáñez MA, Chacon MR, Aguilera-Arreola MG, Catalán V, Figueras MJ and Martínez-Murcia AJ(2004). Phylogenetic analysis of the genus Aeromonas based on two housekeeping genes. International journal of systematic and evolutionary microbiology, 54(Pt 5), 1511~1519.
[https://doi.org/10.1099/ijs.0.03048-0]
-
Soto E, LaFrentz BR, Yun S, Megarani D, Henderson E, Piewbang C, Johnston AE, Techangamsuwan S, Ng TFF, Warg J, Surachetpong W and Subramaniam K(2024). Diagnosis, isolation and description of a novel amnoonvirus recovered from diseased fancy guppies, Poecilia reticulata. Journal of fish diseases, 47(6), e13937.
[https://doi.org/10.1111/jfd.13937]
-
Sreedharan K, Philip R and Singh ISB(2013). Characterization and virulence potential of phenotypically diverse Aeromonas veronii isolates recovered from moribund freshwater ornamental fishes of Kerala, India. Antonie Van Leeuwenhoek, 103(1), 53~67.
[https://doi.org/10.1007/s10482-012-9786-z]
- USDA (United States Department of Agriculture) - NASS (National Agricultural Statistics Service). 2019. Census of Agriculture 2017, Census of Aquaculture 2018. Volume 3, Special Studies, Part 2. https://www.nass.usda.gov/Publications/AgCensus/2017/Online_Resources/Aquaculture/AQUA.txt
- Vijayaraghavan P and Vincent SGP(2013). A Simple Method for the Detection of Protease Activity on Agar Plates Using Bromocresolgreen Dye. Journal of Biochemical Technology, 4, 628~630.
-
Weisburg WG, Barns SM, Pelletier DA and Lane DJ(1991). 16S ribosomal DNA amplification for phylogenetic study. Journal of bacteriology, 173(2), 697~703.
[https://doi.org/10.1128/jb.173.2.697-703.1991]
-
Yáñez MA, Catalán V, Apráiz D, Figueras MJ and Martínez-Murcia AJ(2003). Phylogenetic analysis of members of the genus Aeromonas based on gyrB gene sequences. International journal of systematic and evolutionary microbiology, 53(Pt 3), 875~883.
[https://doi.org/10.1099/ijs.0.02443-0]
-
Yang Q, Zhao M, Wang KY, Wang J, He Y, Wang EL, Liu T, Chen DF and Lai W(2017). Multidrug-Resistant Aeromonas veronii Recovered from Channel Catfish (Ictalurus punctatus) in China: Prevalence and Mechanisms of Fluoroquinolone Resistance. Microbial drug resistance (Larchmont, N.Y.), 23(4), 473~479.
[https://doi.org/10.1089/mdr.2015.0296]
-
Yoon SH, Lyu JJ, Kim YJ, Jin JW and Jeong HD(2012). Comparative risks of resistant microorganisms in the intestinal track of imported freshwater ornamental fish and cultured marine fish. JOURNAL OF FISH PATHOLOGY, 25(2), 77~84.
[https://doi.org/10.7847/jfp.2012.25.2.077]
-
Zhu D, Li A, Wang J, Li M, Cai T and Hu J(2007). Correlation between the distribution pattern of virulence genes and virulence of Aeromonas hydrophila strains. Frontiers of Biology in China, 2(2), 176~179.
[https://doi.org/10.1007/s11515-007-0024-4]